珠心とは
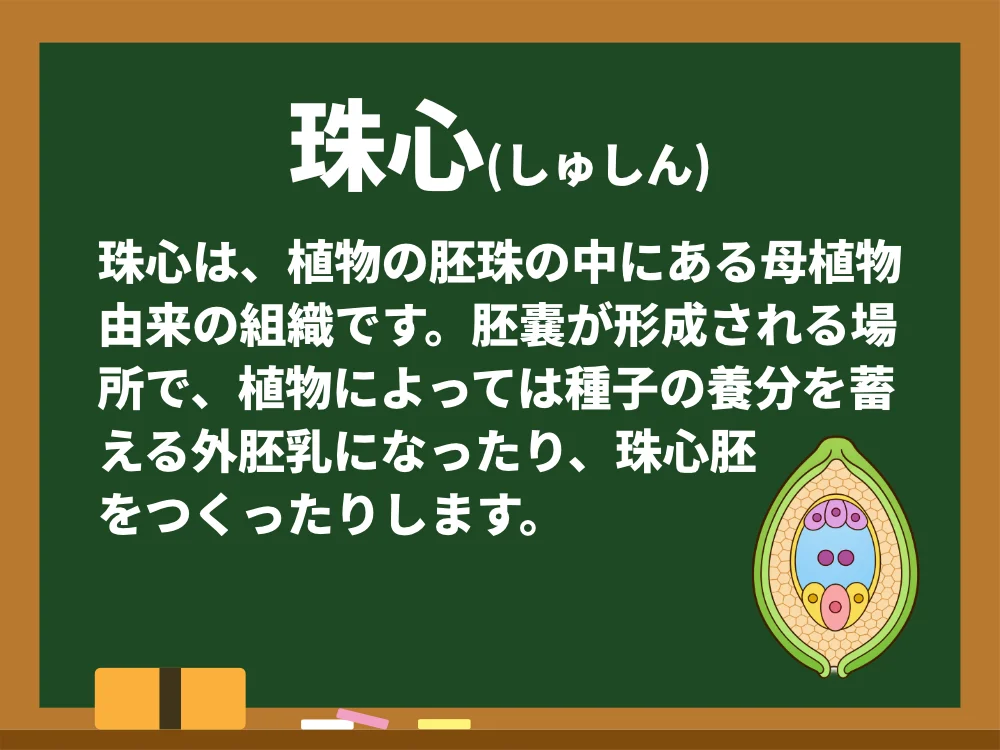
珠心(しゅしん、nucellus)とは、胚珠の内部にある母植物由来の組織で、雌性生殖系列が形成される場所です。
種子植物の生活環では、珠心は大胞子嚢(だいほしのう、megasporangium)に相当します。
被子植物では、通常、珠心内で大胞子母細胞が形成され、減数分裂によって大胞子が生じます。そのうち機能する大胞子が発達し、雌性配偶体である胚嚢が形成されます。
珠心の外側には珠皮が発達し、珠皮の先端には珠孔と呼ばれる開口部が残ります。
珠心と胚嚢は異なる組織です。
珠心は母植物の胞子体に由来し、その内部に雌性配偶体である胚嚢が形成されます。典型的な二倍体植物では、珠心の細胞は2n、減数分裂で生じる大胞子はnとなります。
珠心は胚珠のどこにある?
珠心は、胚珠を包む珠皮の内側に位置しています。
一般的な被子植物の胚珠を外側から内側へ簡略化すると、次の位置関係になります。
珠皮 → 珠心 → 胚嚢
珠心は珠皮に囲まれ、その内部に胚嚢が形成されます。
胚嚢には卵細胞、助細胞、中央細胞、反足細胞などが存在します。
これらは雌性配偶体を構成する細胞であり、母植物由来の珠心細胞とは区別されます。
なお、胚嚢の発達に伴って珠心組織の一部が退化する植物もあり、発育段階によって両者の位置関係や接触状態は変化します。
珠心は母植物由来の胞子体組織
珠心を理解するには、植物の胞子体と配偶体の違いを押さえる必要があります。
植物の生活環では、減数分裂によって胞子が形成され、その胞子から配偶体が発達します。
被子植物では、珠心内の大胞子母細胞が減数分裂し、通常は染色体を1組持つ大胞子を形成します。
典型的な二倍体植物の場合、次のように整理できます。
- 珠心:母植物由来の胞子体組織。通常2n。
- 大胞子母細胞:珠心内に形成される減数分裂前の細胞。通常2n。
- 大胞子:減数分裂によって形成される細胞。通常n。
- 胚嚢:機能的大胞子から発達する雌性配偶体。
ただし、倍数性の異なる植物や無融合生殖を行う植物では、核相や形成過程に例外があります。
珠心を「必ず2nの組織」と定義するよりも、母植物の胞子体に由来する組織と理解する方が正確です。
珠心から胚嚢が形成されるまで
一般的な被子植物のタデ型胚嚢では、珠心内部で次のように雌性配偶体が形成されます。
- 大胞子母細胞の形成
珠心内部の生殖系列細胞が分化し、大胞子母細胞が形成されます。 - 減数分裂
大胞子母細胞が減数分裂し、通常4個の大胞子を形成します。 - 機能的大胞子の選択
一般に4個の大胞子のうち3個が退化し、1個が機能的大胞子として残ります。 - 核分裂
機能的大胞子の核が通常3回分裂し、8核の状態になります。 - 細胞化と分化
卵細胞、助細胞、中央細胞、反足細胞などが分化し、典型的な7細胞8核の胚嚢が形成されます。
胚嚢形成の過程は植物種によって異なります。
また、7細胞8核は代表的なタデ型胚嚢の基本構造であり、すべての被子植物に共通するものではありません。
珠心が大胞子嚢と呼ばれる理由
珠心は、植物の進化や世代交代を説明する際に、大胞子嚢に相当する構造として扱われます。
胞子嚢とは、胞子が形成される構造です。
コケ植物やシダ植物では、形成された胞子が散布され、適切な環境で発芽して配偶体へ発達します。
これに対し、種子植物では、珠心内で形成された大胞子が通常は母植物から散布されず、その内部に保持されたまま雌性配偶体へ発達します。
この仕組みが胚珠の形成と種子植物の生殖を特徴づけています。
珠心は胚嚢の周囲にあるだけの組織ではなく、種子植物の生活環における大胞子形成の場でもあります。
珠心と珠皮の違い
珠心と珠皮は、いずれも胚珠を構成する母植物由来の組織ですが、位置と役割が異なります。
- 珠心(Nucellus):胚珠内部にあり、大胞子母細胞と雌性配偶体が形成される場所です。
- 珠皮(Integument):珠心を外側から包む組織で、一般に種子形成後の種皮の主要な起源となります。
珠皮は珠心基部側の合点付近から発達し、珠心の周囲を包み込むように伸長します。
珠皮の先端に残る開口部が珠孔です。
多くの被子植物では、受粉後に伸びた花粉管が珠孔側から進入し、胚嚢へ到達します。
薄珠心性と厚珠心性の違い
被子植物の珠心には、発達過程で形成される珠心組織の厚さや細胞層の構成に違いがあります。
特に、大胞子母細胞の珠孔側に形成される珠心組織の状態が、分類上の特徴となります。
薄珠心性胚珠
薄珠心性(tenuinucellate)の胚珠では、大胞子母細胞と珠心表皮との間に介在する珠心組織が少ない、または存在しない構造になります。
シロイヌナズナは、薄珠心性胚珠を持つ代表的な研究材料です。
厚珠心性胚珠
厚珠心性(crassinucellate)の胚珠では、大胞子母細胞の珠孔側に、表皮下由来の珠心細胞層が形成されます。
初期に分岐した被子植物の系統や、モクレン類などで広く見られる構造です。
珠心の厚さによる分類の注意点
薄珠心性と厚珠心性の違いは、単に成熟胚珠の外観的な厚さだけで決まるものではありません。
大胞子母細胞の形成過程や、その周囲に生じる珠心細胞層の発生起源が関係します。
また、両者の中間的な構造や、異なる発生過程で厚い珠心を形成する例もあるため、すべての被子植物を単純な二分類だけで整理することはできません。
珠心は胚嚢の成長に伴って退化することがある
珠心は、胚珠が形成されてから種子が成熟するまで、同じ構造を維持するとは限りません。
植物によっては、胚嚢が成長する過程で、周囲の珠心細胞が退化します。
シロイヌナズナでは、受精前から珠孔側の珠心細胞が段階的に退化することが明らかになっています。
2026年に公表された研究総説では、この退化が単なる機械的な圧縮による現象ではなく、オーキシン輸送や雌性配偶体由来のシグナルに関係する、制御された細胞死であることが整理されています。
これは、植物細胞内の液胞が関与するプログラム細胞死の一種です。
珠心退化は何のために起こる?
研究では、珠心退化に次のような生物学的意義がある可能性が提案されています。
- 成長する胚嚢のために空間を確保する
- 珠心組織に含まれる資源の再配分に関わる
- 珠孔側の組織環境を変化させ、花粉管の誘引や進入に影響する
ただし、これらの機能がすべての植物で同じように働くと確認されたわけではありません。
特に、花粉管誘引や進入を容易にするという役割には、研究に基づいて提案されている仮説が含まれます。
珠心の退化時期や程度、制御機構は植物種によって異なります。
受精後の珠心はどうなる?
重複受精後、胚珠が種子へ発達する過程でも、珠心の状態は変化します。
植物によっては珠心の大部分が退化・消失しますが、一部または大部分が成熟種子まで残るものもあります。
成熟種子に残存した珠心が貯蔵組織として発達したものを、外胚乳(がいはいにゅう、perisperm)と呼びます。
外胚乳は母植物由来の胞子体組織です。
一方、被子植物の胚乳は、通常、中央細胞と精細胞の受精によって形成される組織です。
両者は養分を貯蔵する場合がありますが、発生起源が異なります。
珠心と外胚乳・胚乳の違い
成熟種子の養分貯蔵組織には、植物種によって違いがあります。
- 珠心(Nucellus):受精前から存在する母植物由来の胞子体組織。
- 外胚乳(Perisperm):成熟種子まで残存し、貯蔵組織となった珠心由来の組織。
- 胚乳(Endosperm):被子植物では通常、中央細胞と精細胞の受精産物から形成される組織。
例えば、キヌアやアマランサスでは、珠心由来の外胚乳が発達し、成熟種子の主要な養分貯蔵組織となります。
一方、イネ、コムギ、トウモロコシなどでは、成熟種子の主要な貯蔵組織は胚乳です。
種子内に白色や粉質の貯蔵組織があるという外観だけでは、胚乳か外胚乳かを判断できません。
外胚乳は「胚乳の外側にある部分」という意味ではありません。
カンキツの珠心胚とは
農業・園芸分野で珠心が特に関係する現象の一つに、カンキツ類の珠心胚(しゅしんはい、nucellar embryo)があります。
一部のカンキツでは、受精卵から生じる胚とは別に、胚嚢の周囲にある母植物の珠心細胞から胚が形成されます。
これが珠心胚です。
珠心胚は母植物の体細胞に由来するため、通常、母植物と同じ遺伝的構成を持つクローンになります。
ただし、体細胞突然変異などによる例外はあります。
珠心胚と多胚性
カンキツの一部の品種では、一つの種子内に受精卵由来の交雑胚と、複数の珠心胚が形成されます。
このように一つの種子に複数の胚が存在する性質を多胚性(polyembryony)と呼びます。
ウンシュウミカンなどは、多胚性を示す代表的なカンキツです。
一方、カンキツには単胚性の品種もあり、すべてのカンキツが多胚性になるわけではありません。
また、多胚性という言葉は一つの種子に複数の胚が存在する状態を表すため、多胚性の仕組みがすべて珠心胚形成によるとは限りません。
珠心胚の形成と受精の関係
珠心胚は、卵細胞と精細胞の受精によって形成される胚ではありません。
母植物の珠心細胞から直接生じるため、不定胚形成(adventive embryony)の一種に分類されます。
この現象は、母植物の胞子体組織から無性的に胚が形成されるアポミクシス(無融合生殖)の一型として扱われます。
ただし、通常のカンキツの多胚性種子では、珠心胚が十分に発達して成熟するために、受精によって形成される胚乳が関係しています。
そのため、珠心胚自体が受精卵由来ではないことと、種子全体の形成に受精が不要であることは区別します。
カンキツ育種と珠心胚
珠心胚の形成は、カンキツの品種改良や苗生産に関係しています。
多胚性品種を種子親として交配すると、得られた実生の多くが母植物由来の珠心胚から発生する場合があります。
その結果、目的とする交雑実生を効率よく獲得することが難しくなります。
珠心胚と受精卵由来の交雑胚は、外観だけでは区別が困難な場合があります。
珠心胚と交雑胚を識別する技術
農研機構は2019年、カンキツの多胚性に関係する遺伝子CitRKD1を特定し、多胚性と単胚性の遺伝子型を識別するDNAマーカーを開発したと発表しました。
これは、交雑育種で使用する親品種や育種材料の選定を効率化する技術です。
ただし、多胚性の遺伝子型を識別することと、一つの種子から発生した個々の実生が珠心胚由来か交雑胚由来かを直接判定することは、同じ検査ではありません。
個々の実生の由来を確認する場合には、親子間で区別できるDNAマーカーなど、目的に適した方法を用います。
裸子植物にも珠心はある?
珠心は被子植物に限られた構造ではありません。
マツ、イチョウ、ソテツなどの裸子植物の胚珠にも珠心があります。
裸子植物でも珠心は大胞子嚢に相当し、その内部で大胞子が形成され、雌性配偶体が発達します。
ただし、被子植物の胚嚢と裸子植物の雌性配偶体では、構造や発達、受精の仕組みが異なります。
また、裸子植物の胚珠は子房内に包まれておらず、珠孔から取り込まれた花粉による花粉管の伸長などが珠心内で進む例もあります。
農業で珠心を理解する意味
珠心は、種子形成や胚嚢の発達、カンキツの珠心胚形成などを理解するための基礎となる組織です。
ただし、通常の栽培現場で珠心そのものを直接観察して生育診断することは一般的ではありません。
結実不良や種子形成不良が起きても、外観だけで珠心の異常と断定することはできません。
種子形成不良が発生した場合の確認事項
原因を調べる際には、次の過程を分けて考えます。
- 胚珠の形成:胚珠や珠心などの生殖組織が正常に発達しているか。
- 大胞子形成:大胞子母細胞の形成や減数分裂に異常がないか。
- 胚嚢の発達:卵細胞、中央細胞などが正常に形成されているか。
- 受粉・受精:花粉形成、花粉管伸長、受精の成立に問題がないか。
- 受精後の発達:胚、胚乳、母植物由来組織の発達が正常に進んでいるか。
作物・品種、開花時期、栽培環境、種子の状態などを併せて確認し、原因を絞り込みます。
珠心細胞の異常を直接確認するには、胚珠の組織切片や顕微鏡観察など、専門的な調査が必要になる場合があります。
診断上の注意:
珠心の退化は植物によって正常な発達過程の一部です。
そのため、珠心が減少・消失していることだけを障害と判断することはできません。
また、種子形成不良を原因不明の珠心異常として扱い、施肥や植物成長調整剤の使用による改善を決めつけることも避けます。
珠心について誤解しやすい点
- 珠心と胚嚢は同じ組織である
珠心は母植物由来の胞子体組織で、胚嚢はその内部に形成される雌性配偶体です。 - 珠心と珠皮は同じ組織である
珠皮は珠心を外側から包む別の組織です。 - 珠心は受精前の胚乳である
珠心は母植物由来の組織で、被子植物の胚乳は通常、中央細胞と精細胞の受精産物から形成されます。 - 珠心が直接卵細胞になる
通常の有性生殖では、大胞子母細胞の減数分裂、大胞子形成、胚嚢形成を経て卵細胞が分化します。 - 珠心は必ず受精後に消失する
植物によっては珠心が成熟種子まで残り、外胚乳になります。 - 珠心の退化は発育障害である
シロイヌナズナなどでは、制御された珠心細胞の退化が正常な胚珠発達の一部として起こります。 - 外胚乳と胚乳は同じ組織である
外胚乳は珠心由来で、胚乳とは発生起源が異なります。 - 珠心胚は受精卵から形成される
珠心胚は母植物の珠心細胞から生じる不定胚です。 - 珠心胚があれば受精は不要である
珠心胚の形成自体は卵細胞の受精を伴いませんが、通常のカンキツでは種子内での成熟に胚乳の形成が関わります。 - 多胚性の種子から生じた実生はすべて珠心胚由来である
受精卵由来の交雑胚と珠心胚が共存する場合があります。 - 種子形成不良は珠心異常によるものである
胚嚢形成、受粉、受精、胚・胚乳の発達など、複数の段階が原因になり得ます。
関連する資材分類・農業用語
参考資料
- Journal of Plant Biology「Pre-fertilization Nucellar Degeneration: Emerging Insights and Future Direction in Ovule Development」(2026年)
- 農研機構「カンキツの多胚性を制御する遺伝子を特定」
- 園芸学会雑誌「カンキツ類の珠心胚形成に関する研究(第2報)」
- 農研機構技報 No.10「カンキツの多胚性・単胚性と育種に関する解説」
- Plant Reproduction「Seed tissue and nutrient partitioning, a case for the nucellus」(2018年)
- Journal of Experimental Botany「Programmed cell death during quinoa perisperm development」(2013年)
- 日本植物生理学会「コケ植物とシダ植物の生活環について」
- 福岡教育大学「被子植物の有性生殖」
見つからない用語・製品の登録をリクエスト
個人情報の入力は不要です。掲載してほしい名称だけをお知らせください。